T. citrinoviride y T. longibrachiatum: por qué el cepario VISE se armó con estas dos
No todo Trichoderma es lo mismo, y el que sirve en un invernadero templado de Europa no es el que aguanta un fertirriego de mediodía en Ica. Estas son las dos especies que sostienen las formulaciones de alta presión de VISE, y lo que la literatura dice que hace cada una.
Publicado el 23 de setiembre de 2026
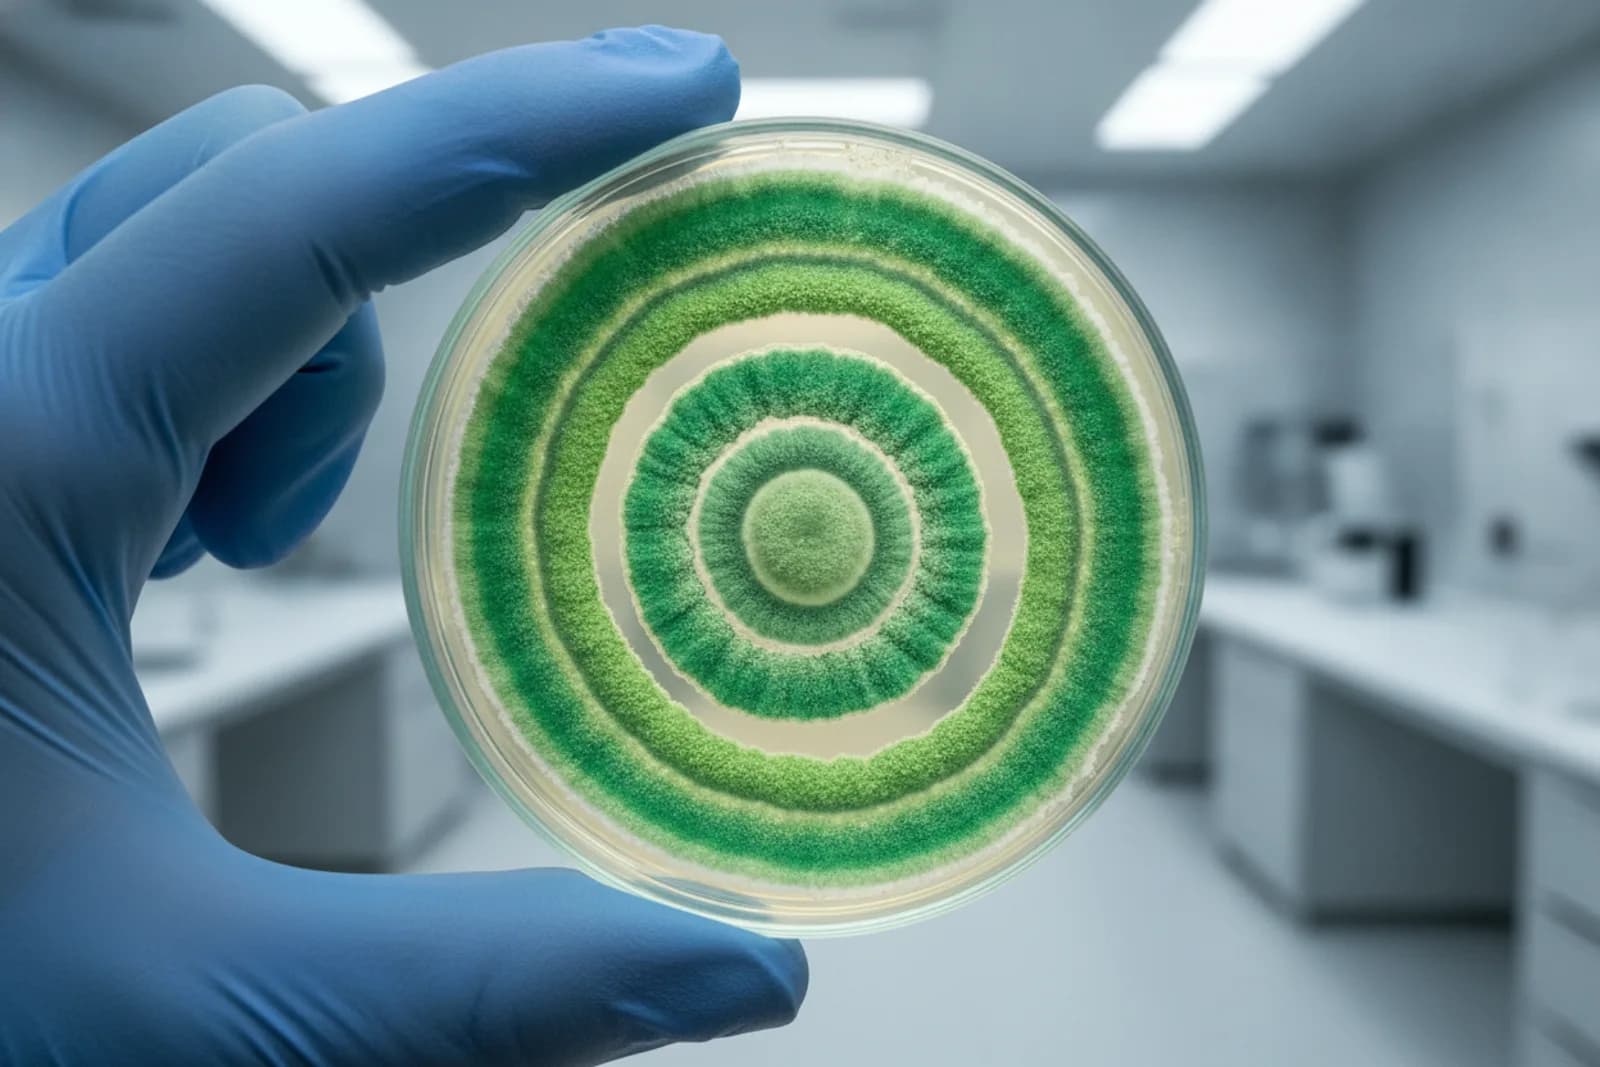
«Lleva Trichoderma» es, en la práctica, tan informativo como decir que un fungicida «lleva una molécula». El género tiene cientos de especies descritas y sus capacidades no se solapan: unas son mejores micoparásitas, otras producen más enzimas líticas, otras toleran calor y salinidad donde las demás se detienen. Elegir la especie es la mitad de la decisión; la otra mitad es la cepa dentro de la especie.
El cepario de VISE se construyó alrededor de tres especies, y dos de ellas —Trichoderma citrinoviride y Trichoderma longibrachiatum— son las que sostienen las formulaciones de alta presión. Vale la pena explicar por qué, con la literatura en la mano y sin adornar lo que no está demostrado.
Trichoderma citrinoviride: el que llega primero
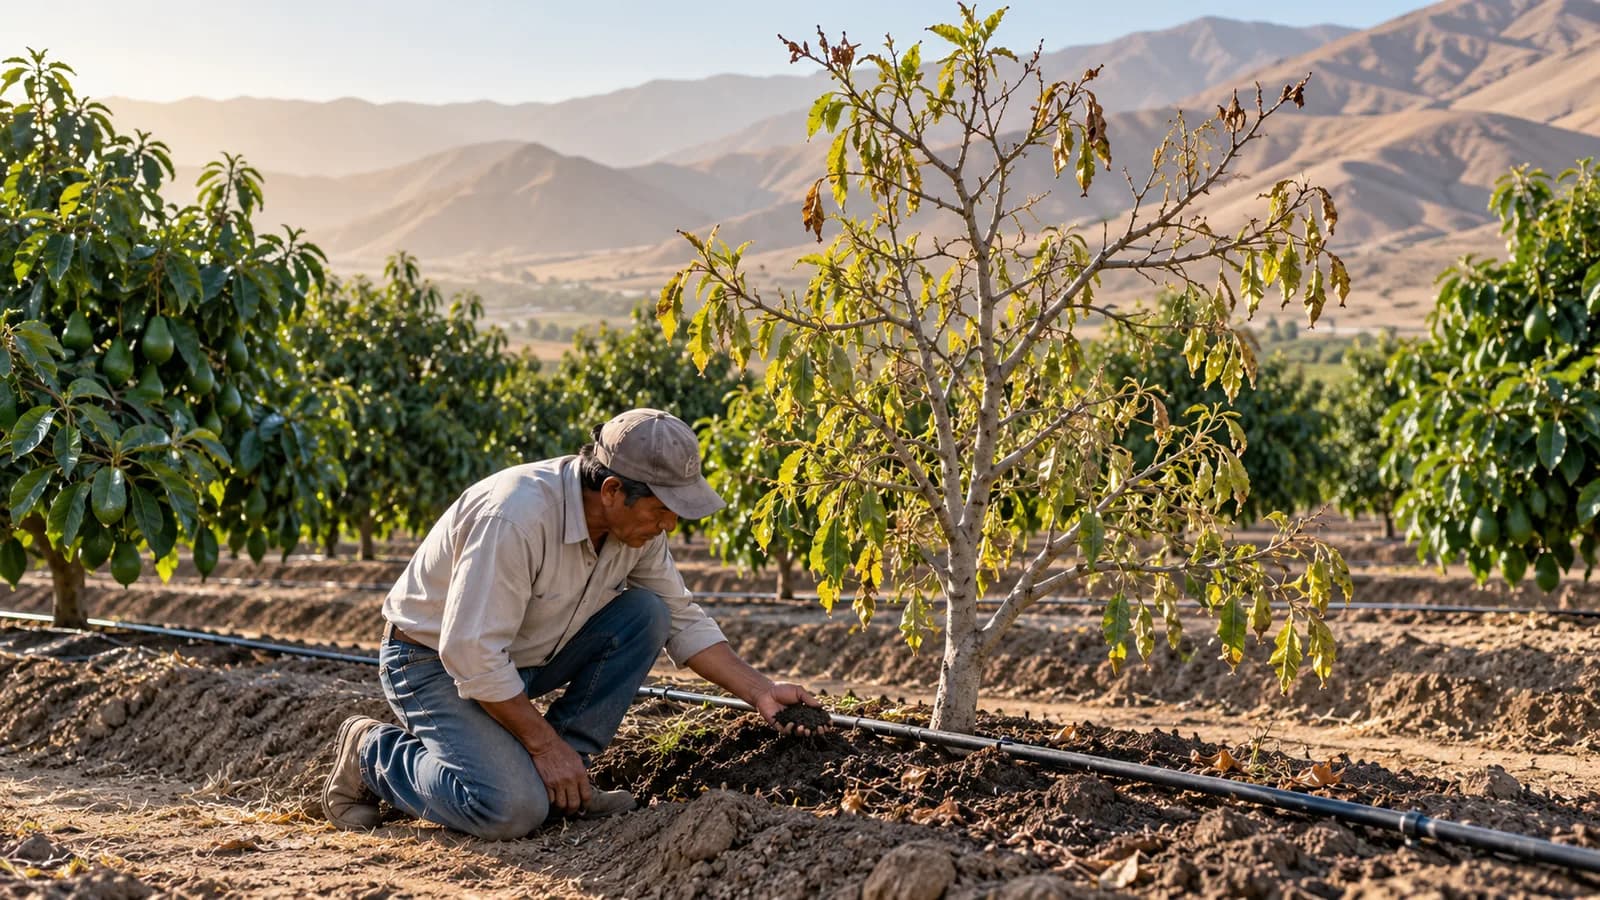
En biocontrol de suelo, buena parte de la batalla es una carrera por el sustrato (Woo et al., 2023). El que coloniza primero la herida, el rizoma cortado o la rizósfera de la planta recién trasplantada es el que se queda con el nicho. T. citrinoviride destaca precisamente ahí: es un colonizador rápido y tolerante, lo que en la costa y en la selva alta peruanas —donde la temperatura del suelo bajo goteo de mediodía no es un dato menor— pesa más que un porcentaje de inhibición medido a 25 °C.
Su arsenal está bien caracterizado. Produce enzimas líticas —quitinasas y glucanasas β-1,3 y β-1,4— cuya biosíntesis se ha optimizado experimentalmente, con un dato práctico: la producción es dependiente de la cepa y de las condiciones, y la temperatura más estimulante para producir quitinasa y glucanasas está por encima de los 25 °C (Piegza y Łaba, 2024). No es un hongo de clima frío.
Produce además biosurfactantes extracelulares con actividad antifúngica propia. En los ensayos donde las fracciones de la espuma del caldo de cultivo inhibieron más el crecimiento de fitopatógenos, la actividad enzimática de quitinasas y laminarinasas era marginal: el efecto venía de los compuestos tensioactivos, no de las enzimas (Piegza et al., 2021). Es un segundo mecanismo, independiente del primero, y eso importa porque un patógeno no desarrolla resistencia a dos frentes con la misma facilidad que a uno.
Lo que T. citrinoviride ha demostrado en ensayo
- Contra Fusarium oxysporum en raíz de ruibarbo: 71,85% de inhibición en cultivo dual, 79,07% con sus metabolitos de fermentación, y 72,53% de control efectivo en planta, activando además enzimas y genes de defensa del hospedero (Chen et al., 2022).
- Contra Rhizoctonia solani en fresa bajo salinidad: 79% de inhibición del patógeno y 63% de reducción de la severidad foliar, con mejor eficiencia del fotosistema II y menos peroxidación de lípidos que el testigo (Sekmen Cetinel et al., 2021).
- Contra el nematodo agallador Meloidogyne incognita: la cepa Snef1910 inhibió la eclosión de huevos en 90,27% a las 48 h, y en campo el control superó el 50%, con más biomasa en tomate (Fan et al., 2020).
- Contra Botrytis cinerea y Cylindrocarpon destructans en ginseng: como endófito formulado en polvo y en gránulos, redujo los síntomas de la enfermedad en ambiente controlado y en campo (Park et al., 2019).
- Frente a cinco patógenos de amplio espectro (Alternaria, Aspergillus, Colletotrichum, Fusarium, Rhizoctonia): inhibición de 50,9% a 61,3% en cultivo dual, y hasta 80,95% con los metabolitos no volátiles contra Fusarium (Al-Mekhlafi et al., 2025).
Ese último trabajo trae un matiz que conviene subrayar: los metabolitos no volátiles del filtrado de cultivo fueron el mecanismo más potente, por encima del contacto directo (Al-Mekhlafi et al., 2025). Traducido al campo, significa que lo que el hongo deja en el suelo trabaja aunque el micelio no llegue físicamente a cada punto.
Trichoderma longibrachiatum: enzimas, nematodos y sal
T. longibrachiatum es un hongo de suelo de distribución mundial pero con presencia dominante en climas cálidos, y eso ya dice algo para el Perú. Es, además, una de las especies con mejor documentación contra nematodos fitoparásitos y contra estrés abiótico, dos frentes donde el productor peruano suele quedarse sin herramientas biológicas (Guzmán-Guzmán et al., 2023).
El mecanismo contra nematodos está descrito al detalle y es físico, no teórico. Con la cepa T6 sobre Heterodera avenae, las observaciones microscópicas muestran al hongo germinando sobre el huevo, produciendo hifas sobre su superficie y terminando por rodearlo con micelio denso hasta lisar su contenido. Sobre los juveniles J2, las conidias se adhieren a la cutícula, producen hifas que la penetran y deforman al nematodo. En invernadero, esa cepa redujo los quistes y juveniles en suelo en 89,8% y 92,7%, y los juveniles y hembras dentro de la raíz en 88,3% y 91,3% (Zhang et al., 2017).
El hongo no «repele» al nematodo: lo parasita. Se adhiere a la cutícula, la perfora y lisa el contenido del huevo. Eso se ve al microscopio, y por eso el efecto no depende de que el productor crea en él.
Esa acción va acompañada de defensa inducida: en esas mismas plantas de trigo subieron significativamente la quitinasa y la β-1,3-glucanasa, y los contenidos de flavonoides totales y lignina (Zhang et al., 2017). En tomate contra Meloidogyne javanica, T. longibrachiatum estuvo entre los tres hongos más eficaces, con más de 60% de mortalidad de juveniles, más de 62% de infección de huevos y menos de 32% de eclosión (Hajji-Hedfi et al., 2022).
La ventaja que casi nadie pide y todos necesitan: salinidad
En la costa peruana, la salinidad no es un problema exótico: es el problema de fondo de muchos suelos bajo riego. Aquí T. longibrachiatum tiene evidencia propia. En trigo bajo 150 mM de NaCl, la cepa T6 aumentó superóxido dismutasa, peroxidasa y catalasa en 29%, 39% y 19% respectivamente, con los genes correspondientes regulados al alza; subió el contenido relativo de agua en hoja y raíz, la clorofila, la actividad radicular y la prolina, y bajó el malondialdehído, que es el marcador de daño de membrana (Zhang et al., 2016).
En melón bajo condiciones salinas, un aislamiento marino de T. longibrachiatum dio el mayor porcentaje de peso seco aéreo —por encima del 80% respecto del control sin sal— y la mejor respuesta antagonista contra Pythium ultimum del ensayo (Sánchez-Montesinos et al., 2019). Y en trigo con doble estrés, salinidad más Fusarium pseudograminearum, la cepa TG1 dio 47,01% de eficacia de control de la pudrición de corona, subiendo AIA, giberelina, ABA y jasmónico (Boamah et al., 2025).
Hay que decirlo con precisión: esto es tolerancia mejorada al estrés, no un producto para recuperar un suelo salino. Un suelo con problemas de sales se arregla con lavado, drenaje y enmienda; lo que el hongo hace es que la planta aguante mejor mientras tanto. Vender lo contrario sería exactamente la clase de promesa que el campo desmiente en una campaña.
Por qué van juntas y no por separado
Las dos especies no compiten: se reparten el trabajo. T. citrinoviride aporta velocidad de establecimiento y tolerancia a temperatura, que es lo que decide quién ocupa primero la herida de poda, el rizoma cortado o la raíz recién trasplantada. T. longibrachiatum aporta el complejo enzimático lítico sobre pared fúngica y material vegetal, y el frente contra nematodos, que ninguna de las dos cubre igual de bien.
Esa es la lógica de las formulaciones de alta presión de VISE, y por eso la combinación aparece donde el problema es exactamente ése: TRIPALTO, en la raíz leñosa del palto que Phytophthora cinnamomi necesita para instalarse; TRIUVA, en la herida de poda de la vid, que es por donde entra el complejo de hongos de madera y se expresa años después como brazo muerto; TRIKIÓN, en el rizoma cortado del kion en suelo húmedo de selva alta; TRIESPÁRRAGO, en el suelo de un cultivo que no rota y acumula Fusarium campaña tras campaña. TRIKOVISE suma la tercera especie del cepario, T. harzianum, y es la formulación para cuando el fundo enfrenta más de un patógeno de suelo a la vez.
Las advertencias que corresponden
- Casi toda la evidencia citada arriba es de cepa específica, no de especie: lo que hace T. longibrachiatum T6 lo hace esa cepa. Por eso VISE trabaja con cepario propio, identificado y caracterizado, y no con género comprado a granel.
- T. longibrachiatum ha sido reportado como patógeno oportunista en personas gravemente inmunocomprometidas, en contexto hospitalario. No es un riesgo del uso agrícola normal, pero es una razón para aplicar con el equipo de protección que corresponde a cualquier bioinsumo, y para no manipular el producto como si fuera agua.
- La concentración de conidias viables del envase importa menos que la viabilidad al momento de aplicar. Un producto guardado al sol en el almacén del fundo pierde lo que dice la etiqueta.
- Nada de esto reemplaza el manejo: drenaje, rotación donde sea posible, poda sanitaria y remoción de material enfermo. El hongo entra a un sistema; no lo sustituye.
Lo que sí se puede afirmar, y está en la etiqueta del envase y no en un folleto, es que la línea declara periodo de carencia y límite máximo de residuos como «no aplica», y que el producto no es tóxico para el ser humano, animales ni abejas. Para quien exporta, eso es lo que cambia la conversación con el comprador.
Las formulaciones que llevan estas dos especies
Cada una está armada para el punto de entrada del patógeno en su cultivo: la raíz leñosa, la herida de poda, el rizoma cortado o el suelo que no rota. Todas declaran su composición y concentración en la ficha.
Referencias
- Al-Mekhlafi, N. A., Al-Harethi, A. A. y Alzanam, N. Y. (2025). Bioefficacy of Trichoderma citrinoviride against some plant pathogenic fungi. Scientific Reports, 15, Artículo 45346. https://doi.org/10.1038/s41598-025-29663-2
- Boamah, S., Zhang, S., Xu, B., Zhu, N. y Li, E. (2025). Trichoderma longibrachiatum TG1 colonization and signal pathway in alleviating salinity and Fusarium pseudograminearum stress in wheat. International Journal of Molecular Sciences, 26(9), Artículo 4018. https://doi.org/10.3390/ijms26094018
- Chen, D., Hou, Q., Fan, B., Zhang, H., Jia, L. y Sun, K. (2022). Biocontrol potential of endophytic Trichoderma citrinoviride HT-1 against root rot of Rheum palmatum through both antagonistic effects and induced systemic resistance. World Journal of Microbiology and Biotechnology, 38(5), Artículo 88. https://doi.org/10.1007/s11274-022-03272-x
- Fan, H., Yao, M., Wang, H., Zhao, D., Zhu, X., Wang, Y., Liu, X., Duan, Y. y Chen, L. (2020). Isolation and effect of Trichoderma citrinoviride Snef1910 for the biological control of root-knot nematode, Meloidogyne incognita. BMC Microbiology, 20, Artículo 299. https://doi.org/10.1186/s12866-020-01984-4
- Guzmán-Guzmán, P., Kumar, A., de los Santos-Villalobos, S., Parra-Cota, F. I., Orozco-Mosqueda, M. C., Fadiji, A. E., Hyder, S., Babalola, O. O. y Santoyo, G. (2023). Trichoderma species: Our best fungal allies in the biocontrol of plant diseases—A review. Plants, 12(3), Artículo 432. https://doi.org/10.3390/plants12030432
- Hajji-Hedfi, L., Hlaoua, W., Al-Judaibi, A. A., Rhouma, A., Horrigue-Raouani, N. y Abdel-Azeem, A. M. (2022). Comparative effectiveness of filamentous fungi in biocontrol of Meloidogyne javanica and activated defense mechanisms on tomato. Journal of Fungi, 9(1), Artículo 37. https://doi.org/10.3390/jof9010037
- Park, Y.-H., Chandra Mishra, R., Yoon, S., Kim, H., Park, C., Seo, S.-T. y Bae, H. (2019). Endophytic Trichoderma citrinoviride isolated from mountain-cultivated ginseng (Panax ginseng) has great potential as a biocontrol agent against ginseng pathogens. Journal of Ginseng Research, 43(3), 408–420. https://doi.org/10.1016/j.jgr.2018.03.002
- Piegza, M. y Łaba, W. (2024). Optimized biosynthesis of lytic enzymes by special Trichoderma citrinoviride. Environmental Science and Pollution Research, 31(51), 60869–60879. https://doi.org/10.1007/s11356-024-35251-0
- Piegza, M., Szura, K. y Łaba, W. (2021). Trichoderma citrinoviride: Anti-fungal biosurfactants production characteristics. Frontiers in Bioengineering and Biotechnology, 9, Artículo 778701. https://doi.org/10.3389/fbioe.2021.778701
- Sánchez-Montesinos, B., Diánez, F., Moreno-Gavira, A., Gea, F. J. y Santos, M. (2019). Plant growth promotion and biocontrol of Pythium ultimum by saline tolerant Trichoderma isolates under salinity stress. International Journal of Environmental Research and Public Health, 16(11), Artículo 2053. https://doi.org/10.3390/ijerph16112053
- Sekmen Cetinel, A. H., Gokce, A., Erdik, E., Cetinel, B. y Cetinkaya, N. (2021). The effect of Trichoderma citrinoviride treatment under salinity combined to Rhizoctonia solani infection in strawberry (Fragaria x ananassa Duch.). Agronomy, 11(8), Artículo 1589. https://doi.org/10.3390/agronomy11081589
- Woo, S. L., Hermosa, R., Lorito, M. y Monte, E. (2023). Trichoderma: A multipurpose, plant-beneficial microorganism for eco-sustainable agriculture. Nature Reviews Microbiology, 21(5), 312–326. https://doi.org/10.1038/s41579-022-00819-5
- Zhang, S., Gan, Y. y Xu, B. (2016). Application of plant-growth-promoting fungi Trichoderma longibrachiatum T6 enhances tolerance of wheat to salt stress through improvement of antioxidative defense system and gene expression. Frontiers in Plant Science, 7, Artículo 1405. https://doi.org/10.3389/fpls.2016.01405
- Zhang, S., Gan, Y., Ji, W., Xu, B., Hou, B. y Liu, J. (2017). Mechanisms and characterization of Trichoderma longibrachiatum T6 in suppressing nematodes (Heterodera avenae) in wheat. Frontiers in Plant Science, 8, Artículo 1491. https://doi.org/10.3389/fpls.2017.01491
SIN PERIODO DE CARENCIA, SIN LÍMITE DE RESIDUO
Las etiquetas de la línea VISE declaran periodo de carencia y límite máximo de residuos como «no aplica», y que el producto no es tóxico para el ser humano, animales ni abejas. El reingreso al área tratada es posible una vez seco el depósito de la aplicación.